Las inmunoglobulinas, también conocidas como anticuerpos, son glicoproteínas esenciales para la defensa del organismo. Producidas por los linfocitos B o sus células plasmáticas derivadas, tienen la capacidad de identificar y neutralizar sustancias extrañas, siendo las principales responsables de la respuesta inmune humoral. Su correcto funcionamiento es vital para la defensa frente a microbios, y su carencia puede ser mortal si no se instaura un tratamiento adecuado y a tiempo.
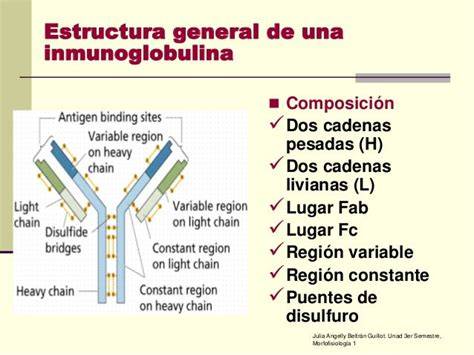
Estructura de las inmunoglobulinas y la región Fab
Las inmunoglobulinas están formadas por cuatro cadenas polipeptídicas: dos cadenas pesadas (de mayor tamaño) y dos cadenas ligeras (de menor tamaño). Ambas se agrupan de tal manera que existe una proximidad espacial entre los cuatro extremos amínicos por una parte y los extremos carboxílicos por otra. Estas cadenas se unen por puentes disulfuro intercatenarios.
Las cadenas ligeras poseen unos 200 aminoácidos cada una y pueden ser de tipo kappa (κ) o lambda (λ). Las cadenas pesadas están formadas por unos 400 aminoácidos y pueden ser de tipo γ, α, μ, δ y ε, las cuales definen las cinco clases de inmunoglobulinas: IgG, IgA, IgM, IgD e IgE, respectivamente.
Tanto las cadenas pesadas como las ligeras poseen grupos de aminoácidos unidos por puentes disulfuro intracatenarios, conocidos como dominios. Presentan una parte variable (VL y VH, respectivamente) en el extremo amínico y una parte constante (CL y CH). Los dominios amino-terminales son los responsables del reconocimiento de antígeno, son los dominios variables (V); de nuevo, la pertenencia a cadenas pesadas o ligeras se hace constar con subíndices VH y VL. Sólo en el caso de las pesadas (ya que las ligeras tienen un único dominio constante), los dominios constantes se numeran: CH1, CH2, CH3. Puede existir un dominio constante adicional (CH4) como en el caso de las IgM e IgE.
El fragmento de unión a antígeno (Fab, del inglés Fragment antigen-binding) es una región en un anticuerpo que se une a los antígenos. Está compuesto por un dominio constante y uno variable de cada una de las cadenas de inmunidad pesada y ligera. El dominio variable contiene el parátopo (el sitio de unión al antígeno), que comprende un conjunto de regiones determinantes de complementariedad, en el extremo amino terminal del monómero. Cada brazo de la Y se une así a un epítopo en el antígeno.
Los Fab contienen las regiones variables de la molécula de inmunoglobulina, que son parte del sitio de unión a antígeno y las primeras regiones constantes. La estructura terciaria es a base de dominios globulares compactos. Estos dominios, de 2,4 x 4,2 nm, presentan una característica, denominada pliegue de inmunoglobulina. Esta estructura terciaria peculiar consiste en un "sándwich" de dos láminas β paralelas respecto del eje longitudinal del dominio, constituidas por entre 3 y 5 cadenas β antiparalelas. Entre dos cadenas β consecutivas existe un bucle, de longitud variable según los casos. Los dominios variables de las cadenas ligeras y pesadas son los encargados de la unión con el antígeno a través de las 6 regiones CDR (tres de cada cadena).
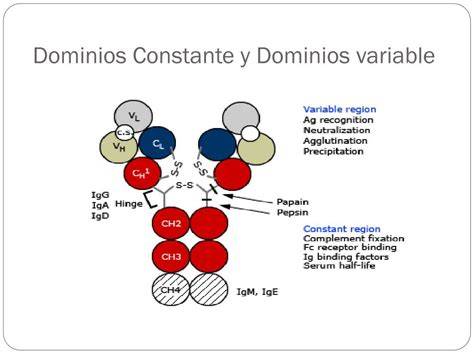
Generación de fragmentos Fab en el laboratorio
En un entorno experimental, los fragmentos Fc y Fab se pueden generar en el laboratorio. La enzima papaína se puede usar para escindir un monómero de inmunoglobulina en dos fragmentos Fab y un fragmento Fc. La enzima pepsina escinde por debajo de la región bisagra, por lo que se forman un fragmento F(ab')2 y un fragmento pFc'.
Recientemente, otra enzima para la generación de F(ab')2 ha estado disponible comercialmente. La enzima IdeS (enzima degradadora de inmunoglobulinas de Streptococcus pyogenes, nombre comercial FabRICATOR) escinde la IgG en una secuencia específica a pH neutro.
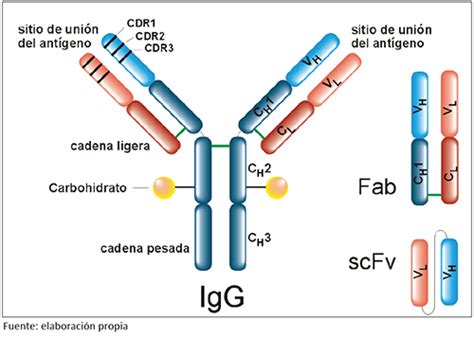
Funciones y aplicaciones de los fragmentos Fab
La función esencial de las inmunoglobulinas es la de unirse a antígenos. La unión del antígeno (Ag) con el anticuerpo (Ac) es específica y semejante a la que se establece entre una enzima y su sustrato, debido a enlaces no covalentes (enlaces de hidrógeno, interacciones electrostáticas, de Van der Waals e hidrófobas). Los anticuerpos se unen al antígeno por lugares determinados conocidos como epítopos. Las inmunoglobulinas se unen a los epítopos de los antígenos por sus sitios activos, constituidos por los segmentos variables de las cadenas pesadas y ligeras, donde intervienen principalmente las regiones hipervariables.
Los fragmentos Fab residen la especificidad de la Ig, y Fc determina la funcionalidad de la molécula. Tras la unión del antígeno y la inmunoglobulina, esta puede anular la acción del antígeno por neutralización, precipitación o aglutinación. Por ejemplo, si la Ig es específica para una toxina bacteriana, cuando se produce la unión Ag-Ig (toxina-antitoxina) quedan neutralizados los efectos tóxicos de la toxina. Sin embargo, estos fenómenos no son suficientes por sí solos para la destrucción y total eliminación de los antígenos, requiriendo la colaboración de otros elementos como el sistema del complemento, macrófagos, polimorfonucleares o células NK.
Los Fab tienen un uso terapéutico en la medicina de emergencia como un antídoto. Las aplicaciones comercializadas incluyen Digoxin inmune fab y Crofab, una mezcla de Fabs para las mordeduras de serpiente de cascabel. Los Fab son un factor de forma común para los anticuerpos monoclonales designados para uso terapéutico.
- Abciximab Fab: inhibe la coagulación sanguínea al deshabilitar la fuente de glicoproteína IIb/IIIa en las plaquetas.
- Ranibizumab: un tratamiento para la degeneración macular, se dirige al factor de crecimiento endotelial vascular A, una proteína involucrada en el crecimiento de los vasos sanguíneos.
- Certolizumab pegol: es un Fab químicamente vinculado a PEG, y trata varios trastornos inflamatorios mediante la unión de TNFα.
Los anticuerpos Fab también tienen uso diagnóstico. Arcitumomab es un anticuerpo de ratón que reconoce el antígeno carcinoembrionario, un antígeno sobreexpresado en el 95% de los cánceres colorrectales. Se conjuga con un elemento radioactivo, que marcará los tumores cuando se observan con tomografía computarizada de emisión de fotón único.
Mecanismo de acción del interferón y su uso en terapias antivirales
Diversidad y especificidad
La estructura general de todos los anticuerpos es muy semejante, pero una pequeña región del ápice de la proteína es extremadamente variable, lo cual permite la existencia de millones de anticuerpos, cada uno con un extremo ligeramente distinto. A esta parte de la proteína se la conoce como región hipervariable. Cada una de estas variantes se puede unir a una «diana» distinta, que es lo que se conoce como antígeno. Esta enorme diversidad de anticuerpos permite al sistema inmune reconocer una diversidad igualmente elevada de antígenos.
La extensa población de anticuerpos y su diversidad se genera por combinaciones al azar de un juego de segmentos genéticos que codifican diferentes lugares de unión al antígeno (o paratopos), que posteriormente sufren mutaciones aleatorias en esta zona del gen del anticuerpo, lo cual origina una diversidad aún mayor. Los genes de los anticuerpos también se reorganizan en un proceso conocido como conmutación de clase de inmunoglobulina que cambia la base de la cadena pesada por otra, creando un isotipo de anticuerpo diferente que mantiene la región variable específica para el antígeno diana. Esto posibilita que un solo anticuerpo pueda ser usado por las diferentes partes del sistema inmune.
El reconocimiento antigénico se basa en la especificidad de la unión con el anticuerpo correspondiente. Dada la enorme variedad de anticuerpos, siempre existe alguno capaz de reconocer a un antígeno concreto. La unión puede ser fuerte o débil.
tags: #extremos #fab #de #la #inmunoglobulina