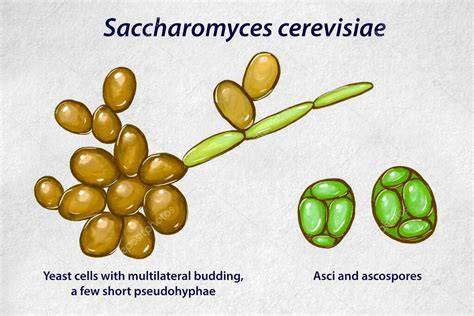
La levadura de cerveza, Saccharomyces cerevisiae, es un hongo unicelular con una amplia relevancia industrial en la fabricación de pan, cerveza y vino. Su capacidad para generar dióxido de carbono y etanol durante la fermentación, especialmente en medios ricos en azúcares como la D-glucosa, la ha convertido en un organismo esencial. Además de su importancia industrial, S. cerevisiae se ha consolidado como un modelo eucariota fundamental para el estudio de problemas biológicos debido a su genoma bien caracterizado, su ciclo de vida versátil y la facilidad de su manipulación genética.
Genoma de Saccharomyces cerevisiae
El genoma de Saccharomyces cerevisiae es el primero de entre los eucariotas en ser secuenciado. Contiene aproximadamente 12.156.677 pares de bases (12 Mb) con 6.275 marcos abiertos de lectura, o genes, de los que se cree que solo 5.800 son realmente funcionales. Está organizado en un conjunto de dieciséis cromosomas completamente caracterizados, con tamaños que oscilan entre 200 y 2.200 kb.
La disponibilidad de la secuencia completa de su genoma y su constante revisión ha permitido una manipulación genética exhaustiva de sus casi 6.600 genes. Esto ha facilitado el uso extensivo de micromatrices de ADN para investigar el transcriptoma y estudios a escala genómica de la expresión génica, localización de proteínas y la organización funcional del genoma y el proteoma.
Evolución del genoma
El genoma de S. cerevisiae ha experimentado modificaciones constantes a lo largo de su evolución. Una de las más destacadas es la Duplicación del Genoma Completo (WGD, por sus siglas en inglés), ocurrida hace aproximadamente 100 millones de años. Este evento, en el que todo el genoma de un ancestro común de Saccharomyces y otros géneros de levaduras se duplicó para dar lugar a una célula tetraploide, fue seguido por una significativa pérdida de genes duplicados y una reordenación cromosómica. Se conservó hasta un 13% de los genes duplicados.
Entre los efectos más relevantes de esta duplicación se observa un flujo glucolítico aumentado gracias a la conservación de copias duplicadas de genes relacionados con la glicólisis. Un ejemplo son los genes ADH1 y ADH2, que contribuyen a un uso más eficiente de la glucosa como fuente de carbono durante la fermentación y la utilización del etanol como fuente de carbono (crecimiento diaúxico).
La duplicación del genoma también permitió la aparición de la estrategia MAC (make-accumulate-consume), que implica el aumento del flujo glicolítico, el efecto Crabtree y el crecimiento diaúxico. Esta estrategia permite a S. cerevisiae utilizar rápidamente la glucosa durante la fermentación produciendo etanol (make), mantener el metabolismo fermentativo para producir etanol independientemente de la presencia de oxígeno en el medio (accumulate) y una posterior utilización del etanol como fuente de carbono (consume).
Reordenaciones cromosómicas
El género Saccharomyces presenta diversos mecanismos para mitigar el efecto del sulfito. Se han descrito tres reordenaciones cromosómicas diferentes que mejoran la detoxificación del sulfito en cepas enológicas de S. cerevisiae, cada una resultando en la sobreexpresión del gen SSU1 mediante la modificación de su promotor:
- La translocación recíproca de SSU1 entre los cromosomas VIII y XVI genera un alelo SSU-R con mayor nivel de expresión que el gen nativo debido al intercambio del promotor con el gen constitutivo ECM34.
- La translocación entre los cromosomas XV y XVI (XVtXVI) posiciona el gen SSU1 bajo el control del promotor del gen ADH1, que se expresa de forma constitutiva.
- Una inversión cromosómica de 38,5 kb en el cromosoma XVI confiere una tolerancia al sulfito similar a las reordenaciones anteriores.
Estas tres reordenaciones han ocurrido de manera independiente y tienen un resultado final similar, aunque con algunas características diferenciadoras. La translocación VIIItXVI es la más abundante en las poblaciones estudiadas, y la translocación XVtXVI es la más eficiente en términos de resistencia al sulfito.
Introgresiones
Tras la secuenciación de 1011 genomas de S. cerevisiae, se identificaron 913 ORF (Open Reading Frame) procedentes de Saccharomyces paradoxus en el pangenoma de S. cerevisiae. Todas las cepas secuenciadas tenían al menos una ORF procedente de S. paradoxus, con una media de 26 ORF por genoma.
Las introgresiones de S. paradoxus en el pangenoma de S. cerevisiae no son exclusivas de esta especie. Se han identificado diversas contribuciones al pangenoma de S. cerevisiae por otras especies más alejadas filogenéticamente mediante transferencia horizontal. Algunos de estos eventos de transferencia horizontal se han relacionado con la adquisición de adaptaciones a un entorno fermentativo.
La adición al pangenoma de S. cerevisiae de una dehidroorotato deshidrogenasa de origen bacteriano es una de las adaptaciones más relevantes a entornos fermentativos a nivel filogenético. La adquisición de este gen ha permitido la síntesis de pirimidina en ausencia de oxígeno utilizando el fumarato como aceptor de electrones, lo que supuso una clara ventaja para imponerse en medios anaerobios como el que se produce durante la fermentación del mosto.
Plásmido de 2 micrómetros y ADN mitocondrial
En el núcleo de S. cerevisiae se encuentra frecuentemente el plásmido de 2 micrómetros. Este fragmento circular de ADN, de 6,3 kb, está presente en muchas levaduras vínicas portadoras en un número de copias variable entre 1 y 210. Codifica únicamente para cuatro proteínas (Rep1, Rep2, Raf1 y Flp) relacionadas con la segregación del plásmido entre las células hijas, el mantenimiento del número de copias y la estabilidad de la molécula. Debido a su gran estabilidad y alto número de copias, se emplea como vector para la expresión de genes de interés.
En cada célula haploide de S. cerevisiae existen aproximadamente de 50 a 200 copias de ADN mitocondrial, lo que corresponde al 15% del ADN total en la célula. Está compuesto en su mayoría por fragmentos lineales de 75 a 150 kb, aunque también se encuentran un pequeño número de moléculas circulares. El ADN mitocondrial de S. cerevisiae posee un bajo contenido general de GC y regiones intergénicas extensas compuestas principalmente por adenosina y timina, que conforman el 62% del genoma mitocondrial.
A pesar de su importancia para diversos procesos celulares, las mutaciones que afectan a la fosforilación oxidativa (fenotipo petite) e incluso la pérdida total del genoma mitocondrial (fenotipo rho0) no resultan letales para S. cerevisiae. Sin embargo, estudios afirman que estas deficiencias comprometen la supervivencia de Saccharomyces a altas y bajas temperaturas o afectan la tolerancia al etanol.
Ciclo de vida de Saccharomyces cerevisiae
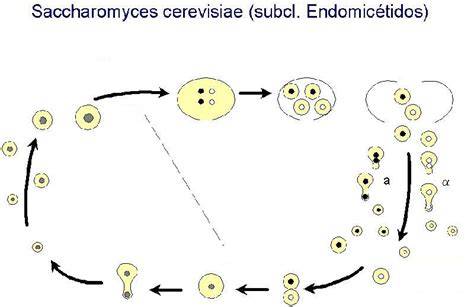
S. cerevisiae puede experimentar tanto reproducción sexual como asexual, lo que le permite adaptarse a distintas condiciones ambientales. En condiciones óptimas, se multiplica por gemación mediante una mitosis asimétrica. Este proceso pueden sufrirlo tanto células haploides como diploides. La mayoría de las células enológicas son diploides, posiblemente debido a su estabilidad genética, tolerancia al estrés y capacidad de adaptación.
Si las condiciones no son favorables, las células diploides pueden llevar a cabo la meiosis para generar un asca con cuatro ascosporas haploides sexualmente diferentes: dos de tipo MATa y dos MATα. Éstas pueden combinarse a su vez para formar una célula diploide MATa/α. El tipo sexual viene determinado por el locus MAT, que se encuentra en el cromosoma III de S. cerevisiae.
Apareamiento en la levadura Saccharomyces cerevisiae
Determinación y cambio de sexo
El apareamiento sexual de las levaduras solo puede ocurrir entre células haploides de distinto sexo (células a y células alfa). La determinación sexual no se debe a un cromosoma distinto entre sexos, sino a una diferencia en un único locus, el locus MAT.
Las células a producen el "Factor a", una feromona peptídica que indica la presencia de células de ese mismo tipo a células del sexo opuesto. Las células a no responden al factor a, pero sí lo hacen si en las inmediaciones existe Factor α. Las células a transcriben los genes que producirán el factor a, además de un receptor de membrana conocido como Ste2p, que es capaz de unirse al factor α y desencadenar una serie de señales intracelulares mediadas por la proteína G. Además, las células a reprimen la expresión de los genes que formarán las proteínas necesarias para la síntesis del factor α y el receptor de membrana Ste3p. En las células α ocurre exactamente lo contrario.
Todas estas diferencias entre activación y represión transcripcional son causadas por la presencia de uno de los dos alelos del locus MAT: MATa o Matα. El alelo Mata codifica para una única proteína denominada a1. Las células haploides de cualquiera de los sexos responden a la feromona producida por el sexo contrario. Las células de sexo opuesto podrán fusionarse, formando una célula diploide.
Las células haploides nunca podrán realizar la meiosis en condiciones normales. Por el contrario, las células diploides no producen ni responden a ninguno de los dos tipos de feromonas, pero sí pueden realizar meiosis bajo condiciones ambientales muy determinadas.
Una levadura haploide es capaz de cambiar de sexo. Si una única célula de tipo a o α está en un medio sin la presencia del sexo contrario, al cabo de unas cuantas generaciones se advierte la presencia de la feromona contraria y un incremento en células diploides. Esta aparición de diploides puede ser tan alta que desplaza a la población de haploides, ya que esta última población tiene una alta tendencia a aparearse. Las cepas de levaduras utilizadas en los laboratorios no suelen realizar este cambio de sexo debido a que están alteradas en el gen HO, que es determinante para el cambio de sexo.
Las levaduras poseen copias del locus MAT que están silenciadas y por tanto no interfieren en la determinación sexual. Cuando se produce un cambio en el sexo, se produce un reemplazamiento génico del locus MAT por una de las copias adicionales. Las copias silenciosas se denominan HML (que generalmente llevan una copia silenciosa del alelo MATα) y HMR (que generalmente lleva una copia silenciosa del alelo MATa). El proceso de cambio sexual en las levaduras viene dado por la conversión génica iniciada por la endonucleasa HO. La endonucleasa HO genera un corte específico en el ADN del locus MAT. La reparación del locus MAT cortado permite el cambio sexual, ya que, por norma general, se reemplaza por el alelo contrario al que estaba en un principio. De esta forma, cuando una célula a decide realizar un cambio sexual, el alelo MATa es degradado y reemplazado por la copia HML. Esto da como resultado el cese de la expresión del antiguo MATa y el inicio de la expresión del nuevo MATα.
Hibridación y fenotipo killer
La generación de híbridos entre cepas de S. cerevisiae puede dar lugar a fenotipos con mayor capacidad de fermentación y producción de metabolitos secundarios. Asimismo, algunos estudios muestran que la hibridación entre especies de Saccharomyces puede generar nuevas cepas, algunas de las cuales se han seleccionado por su impacto en el resultado final del vino. Se han descrito híbridos que aportan una serie de características relevantes para la industria, como la reducción en la concentración de L-malato y sulfitos o diferencias en el perfil aromático, concentración de glicerol y etanol respecto a sus progenitores.
El fenotipo killer en S. cerevisiae consiste en la producción de una serie de toxinas de naturaleza proteica, que pueden matar o inhibir el crecimiento de otras cepas de levadura y hongos filamentosos susceptibles, sin perjudicar a la levadura que las produce. Aunque se ha detectado su producción por otras especies de levaduras y géneros de hongos, fueron descubiertas inicialmente en S. cerevisiae.
Domesticación y especialización de cepas de levadura
Las cepas de levadura de cerveza, Saccharomyces sp., se han seleccionado durante miles de años para absorber la glucosa y producir niveles más altos de alcohol en las fermentaciones, aclimatándose a las condiciones constantes de la elaboración. Esto ha resultado en la evolución de Saccharomyces cerevisiae a partir de especies de levadura salvaje, adaptándose particularmente al ambiente más estable que se encuentra en el mosto de los cerveceros. Estas variedades ya no crecerían en la naturaleza.
El azúcar principal en la naturaleza es la sacarosa, pero en el mosto los azúcares principales son la maltosa y la maltotriosa. Las cepas de levadura de cerveza se han adaptado produciendo una serie de genes no solo para absorber maltosa y maltotriosa, sino también para poder metabolizarlas dentro de la célula. A veces, a través de cambios y mutaciones, la levadura puede perder esta facilidad para utilizar los azúcares de malta, lo que produce atenuaciones más bajas.
Las cepas cerveceras han perdido el gen que se encuentra en las cepas de levadura salvaje, a menudo descrito como los genes POF (compuestos por PAD1 y/o FDC1), que regula la conversión del ácido ferúlico de la pared celular de la cebada en 4-vinil guaiacol (4VG), que da a la cerveza un sabor fenólico. Muchas cepas de ale y todas las levaduras lager se han seleccionado para excluir este gen, pero aún está presente en las cepas de levadura que producen cerveza de trigo y ciertos estilos de cerveza belga.
La domesticación ha dado lugar a dos clados distintos (Beer 1 y Beer 2) de levadura ale. Beer 1 comprende principalmente cepas de levadura encontradas en el Reino Unido y Estados Unidos, y Beer 2 se encuentra comúnmente en el resto de Europa. Esto ha resultado en una gran variedad de levadura ale adaptada a las condiciones de fermentación de cada cervecería. También debido a la redundancia de genes, la levadura de cerveza ha perdido o duplicado diferentes genes y ahora tiene un genoma complejo que a menudo es poliploide (con más de 2 juegos de cromosomas) o aneuploide (con un número anormal o desigual de cromosomas), lo que dificulta la reproducción sexual, y la mayoría de las manchas de elaboración no se reproducen sexualmente de forma natural.
Levadura Lager: Saccharomyces pastorianus
Una consecuencia del cambio a una temperatura de fermentación más fría fue desfavorecer la levadura tradicional que está mal adaptada para prosperar en condiciones de frío, dando la oportunidad de que una nueva cepa de levadura, Saccharomyces pastorianus o levadura lager, evolucione. Se sabe que la levadura lager tiene un genoma más grande que la levadura de cerveza (Saccharomyces cerevisiae), pero durante mucho tiempo no se conocía la fuente del ADN adicional.
En 2011, el Dr. Diego Libkind encontró una nueva especie de levadura, Saccharomyces eubayanus, que crece en bosques templados en la Patagonia en Nothofagus Beech Trees, que se parece mucho al componente genético no cerevisiae en la levadura Lager. Desde entonces, se han encontrado especies de S. eubayanus en América del Norte y China. Pero hasta ahora, no se han encontrado aislamientos de S. eubayanus en Europa.
Dado que las especies de levadura de cerveza no esporulan fácilmente y no viajan fácilmente entre diferentes lugares, excepto principalmente en el estómago de los insectos, esto deja una pregunta intrigante sobre cómo S. eubayanus encontró su camino a Europa y entró en una bodega alemana de Lager en el siglo XVI para formar un híbrido con S. cerevisiae. Esto ha dado lugar a varias teorías para explicar cómo podría ocurrir la hibridación y cómo S. eubayanus encontró su camino en una bodega de cerveza de Múnich.
Las ideas basadas en la distribución actual de S. eubayanus incluyen:
- El genoma de S. eubayanus del Tíbet muestra la mejor correlación (99.82%) con el contenido genético no S. cerevisiae de S. pastorianus y es posible que haya encontrado su camino hacia Europa en la caravana de Marco Polo por la Ruta de la Seda.
- El primer aislado de S. eubayanus fue descubierto en la Patagonia por Diago Libkin, quien especuló que la levadura podría haber encontrado su camino a Europa en barriles de madera tras los descubrimientos de Magallanes cuando circunnavegaba el mundo.
La hibridación de levadura lager produjo dos cepas distintas, Grupo 1 - Saaz y Grupo II - Frohberg, que llevan el nombre de las áreas en las que se aislaron. Saaz tiene una mayor capacidad para crecer a bajas temperaturas, pero es menos eficiente en la atenuación en comparación con las cepas Frohberg. Esto se debe en parte a su menor utilización de maltosa y maltotriosa. Frohberg también produce ésteres superiores, lo que lo convierte en el antecesor dominante de la mayoría de las variedades modernas de Lager.
S. eubayanus es una levadura silvestre que no ha sido domesticada por su propiedad de elaboración de cerveza y produce una cerveza distintiva. Todavía tiene los genes POF y todas las cervezas tienen aromas de clavo/fenólico (4-vinil guayacol) y la levadura no es eficiente en la metabolización completa de la maltosa y en particular la maltotriosa, lo que proporciona cervezas atenuadas más pobres.
La levadura lager (S. pastorianus) solo prospera en la fermentación y se ha seleccionado para expresar los genes útiles de sus dos híbridos progenitores. Dado que es una especie relativamente reciente (alrededor de 500 años) y la selección natural se suspendió en gran parte luego de la adopción de cultivos puros y la propagación de levaduras hace 100 años, ha habido poco tiempo para la selección y la levadura lager muestra poca variación genética en comparación con las especies grandes.
Aplicaciones industriales y futuras direcciones
Además de las cepas naturales de levadura "salvaje" que se pueden lanzar directamente para producir cervezas novedosas, se han realizado investigaciones considerables para producir cepas de levadura modificadas genéticamente (OGM). Sin embargo, existe una considerable resistencia de los consumidores contra el uso de productos modificados genéticamente en la elaboración de cerveza debido a los temores sobre posibles riesgos para la salud y el impacto ambiental. No hay relatos publicados de levaduras modificadas genéticamente que se utilicen en la elaboración de cerveza comercial.
Un enfoque alternativo sugerido por Hittinger es la hibridación de levadura, que se produce naturalmente y se puede utilizar para generar nuevos híbridos de levadura de cerveza a partir de la hibridación de novo, evitando los OGM. La levadura de cerveza está excepcionalmente bien adaptada para utilizar los azúcares de mosto y puede fermentar completamente en pocos días en comparación con la cerveza de estilo lambic o agria, que suele tardar entre 1 y 2 años en desarrollarse por completo. La producción de híbridos puede permitir que las mejores características de ambas cepas se incluyan en el organismo que entrega los sabores requeridos, pero que conserva la eficiencia del proceso de fermentación. Un ejemplo natural es la hibridación de Saccharomyces cerevisiae con Saccharomyces eubayanus para producir la nueva especie Saccharomyces pastorianus, la levadura Lager.